سلول، غشا و کانالهای یونی
علوم اعصاب محاسباتی، در بنیادِ خود، کوششی است برای توصیفِ ریاضیِ آنچه در یک نورون میگذرد. اما پیش از نوشتنِ هر معادلهای باید بدانیم آن معادله چه چیزی را مدل میکند. این نخستین فصل از بخشِ بیوفیزیک نورون، پایهٔ زیستی را میسازد: نورون چیست، غشای آن چگونه ساخته شده، و چرا این غشا میتواند بار الکتریکی را از دو سو جدا کند. فصلهای بعدِ این بخش هر یک از این ایدهها را به یک مدلِ کمّیِ محاسباتی بدل میکنند — پتانسیلِ استراحت (نرنست و گلدمن)، غشای غیرفعال (مدارِ RC)، انتشارِ فضایی (نظریهٔ کابل)، و ورودیِ سیناپسی.
در پایانِ این فصل خواهید توانست
- اجزای اصلیِ یک سلول و بهویژه یک نورون را نام ببرید.
- توضیح دهید چرا دولایهٔ فسفولیپیدی نسبت به یونها نفوذناپذیر است و چگونه غشا به یک عایقِ الکتریکی بدل میشود.
- کانالهای یونی را بر پایهٔ سازوکارِ دریچهگذاری (gating) دستهبندی کنید.
- سرچشمهٔ گزینشگریِ کانالها را توضیح دهید و بگویید چرا یک کانالِ پتاسیمی، پتاسیم را بر سدیمِ کوچکتر ترجیح میدهد.
ساختار سلول
سلولها واحدهای بنیادینِ حیاتاند. یک سلول از محلولِ آبیِ غلیظی از مواد شیمیایی تشکیل شده و میتواند با رشد و تقسیم خود را تکثیر کند. سلولهایی که هسته دارند یوکاریوت و آنها که هسته ندارند پروکاریوت نامیده میشوند؛ حیوانات موجوداتی چندسلولی با سلولهای یوکاریوتیاند. قطرِ یک سلولِ نوعی در حدودِ ۵ تا ۲۰ میکرومتر است. همهٔ سلولهای یوکاریوت ساختارِ اساسیِ مشابهی دارند: یک هسته (که DNA در کروموزومهای آن بستهبندی شده)، شماری اندامک درونِ سیتوپلاسم (مانندِ میتوکندری که انرژی تولید میکند و شبکهٔ آندوپلاسمی)، و یک غشای پلاسمایی که سلول را از محیطِ بیرون جدا میکند.
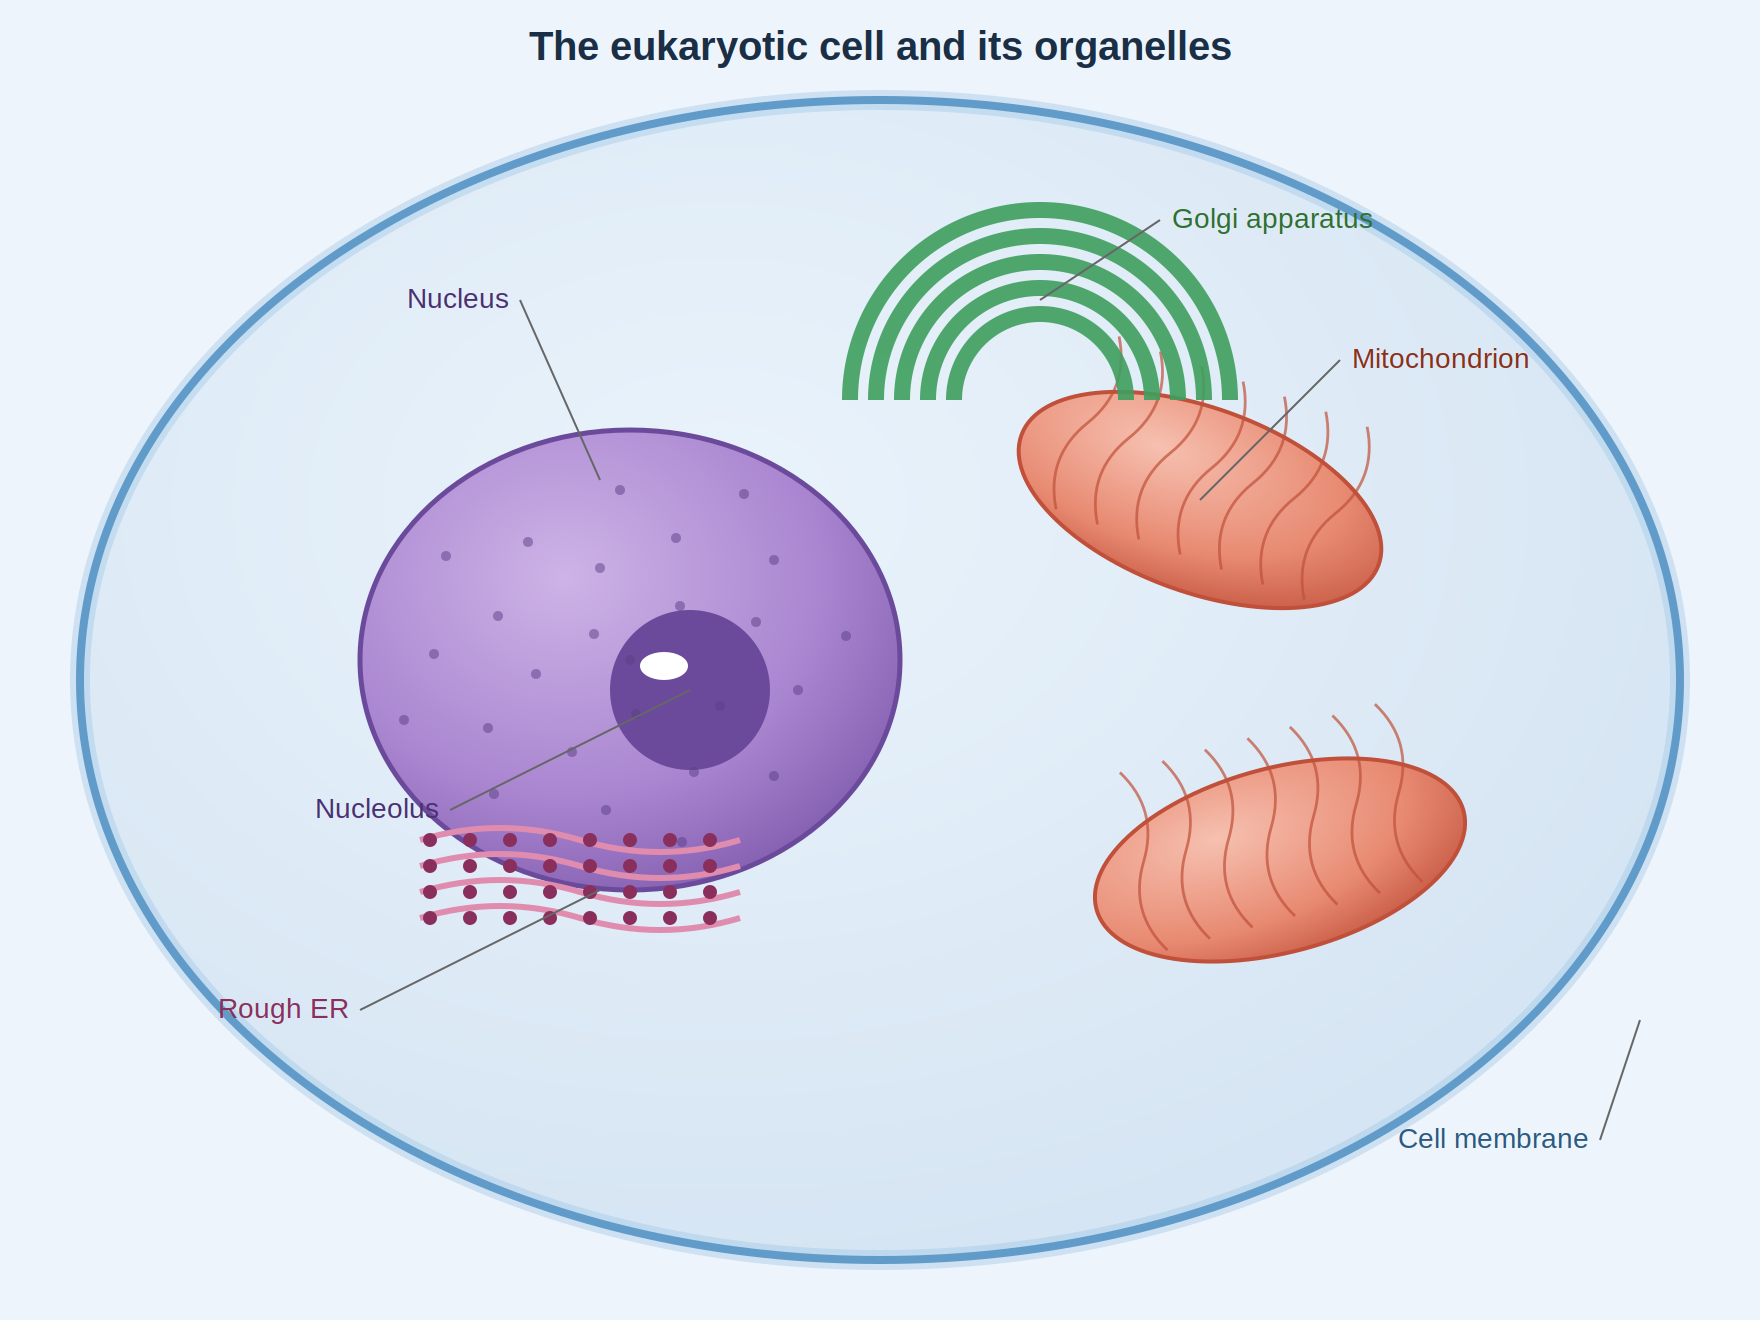
یک سلولِ یوکاریوت و اندامکهای اصلیاش: هسته (با هستک)، میتوکندری، شبکهٔ آندوپلاسمیِ زبر، دستگاهِ گلژی و غشای سلول — همه شناور در سیتوپلاسم.
همین غشای پلاسمایی است که برای ما بیش از همه اهمیت دارد، چون همهٔ پدیدههای الکتریکیِ نورون بر سطحِ آن رخ میدهند.
سلولهای عصبی
در بدنِ انسان سلولهای متنوعی وجود دارند: سلولهای ماهیچهای، سلولهای حسی، گلبولهای خون، و سلولهای عصبی یا نورونها. وظیفهٔ بنیادیِ نورونها دریافت، هدایت و انتقالِ سیگنال است: آنها سیگنالها را از اندامهای حسی به سیستمِ عصبیِ مرکزی (مغز و نخاع) میبرند، آنجا سیگنالها تحلیل و تفسیر میشوند، و پاسخ دوباره بهسوی ماهیچهها و غدد فرستاده میشود.
نورونها شکلها و اندازههای گوناگون دارند، اما یک نورونِ نوعی از چهار بخش تشکیل شده است: جسمِ سلولی (سوما)، دندریتها (که ورودی میگیرند)، آکسون (که خروجی را حمل میکند)، و پایانههای پیشسیناپسی (که سیگنال را به سلولِ بعدی میرسانند).
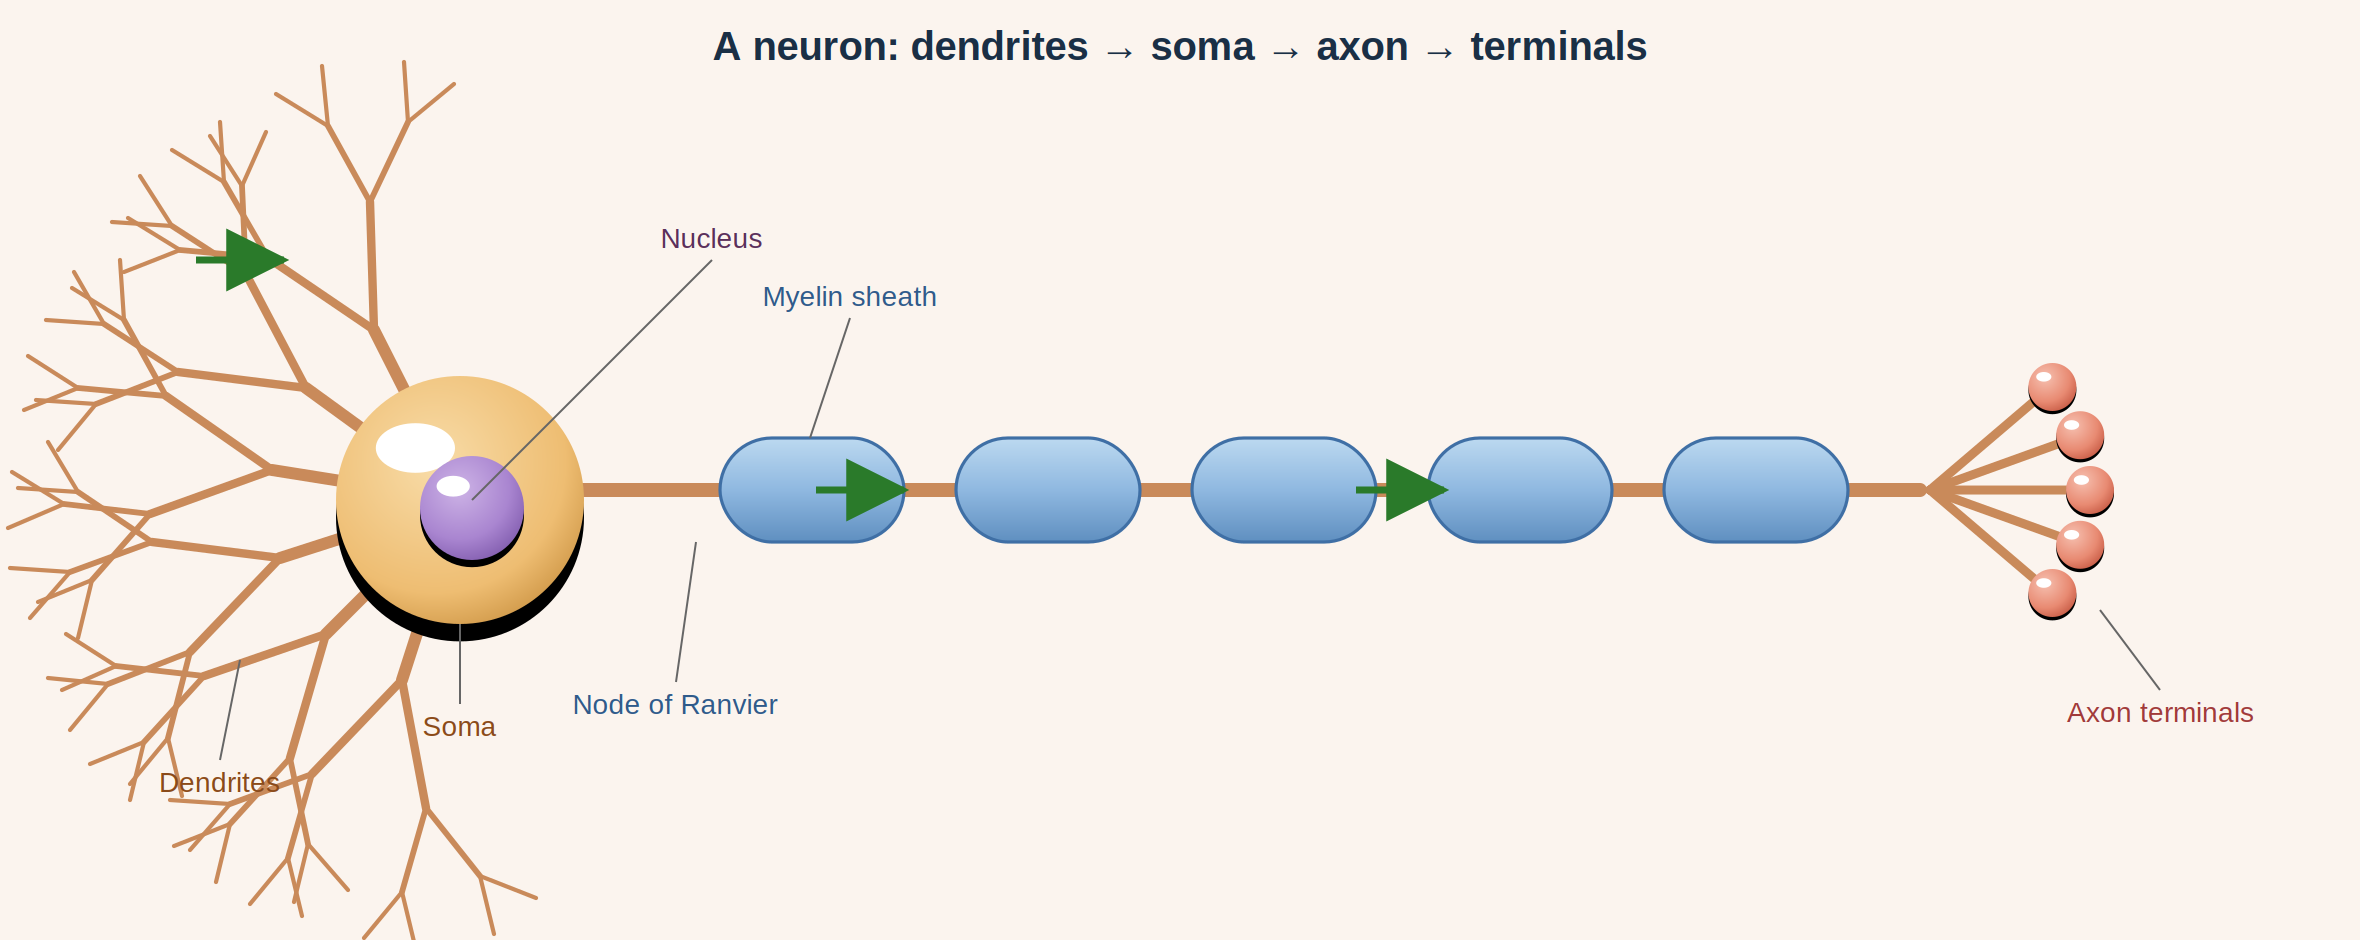
ساختارِ یک نورون: دندریتها ورودی میگیرند، سوما (جسمِ سلولی) آنها را جمع میکند، و آکسونِ میلیندار — با گرههای رانویه میانِ قطعاتِ میلین — سیگنال را به پایانههای آکسونی میرساند. فلشهای سبز جهتِ هدایتِ سیگنال را نشان میدهند.
غشای سلول و ساختارِ فسفولیپیدی
غشای پلاسمایی از یک دولایهٔ لیپیدی ساخته شده که در جایجای آن پروتئین نشسته است. سازندهٔ اصلیِ این دولایه، فسفولیپید است: مولکولی با یک سرِ آبدوست (قطبی) و دو دمِ آبگریز (ناقطبی). همین دوگانگی باعث میشود فسفولیپیدها در محیطِ آبی بهطورِ خودبهخود به شکلِ یک دولایه سامان یابند — سرهای آبدوست رو به محلولِ آبیِ درون و بیرونِ سلول، و دمهای آبگریز رو به یکدیگر در میانهٔ غشا.
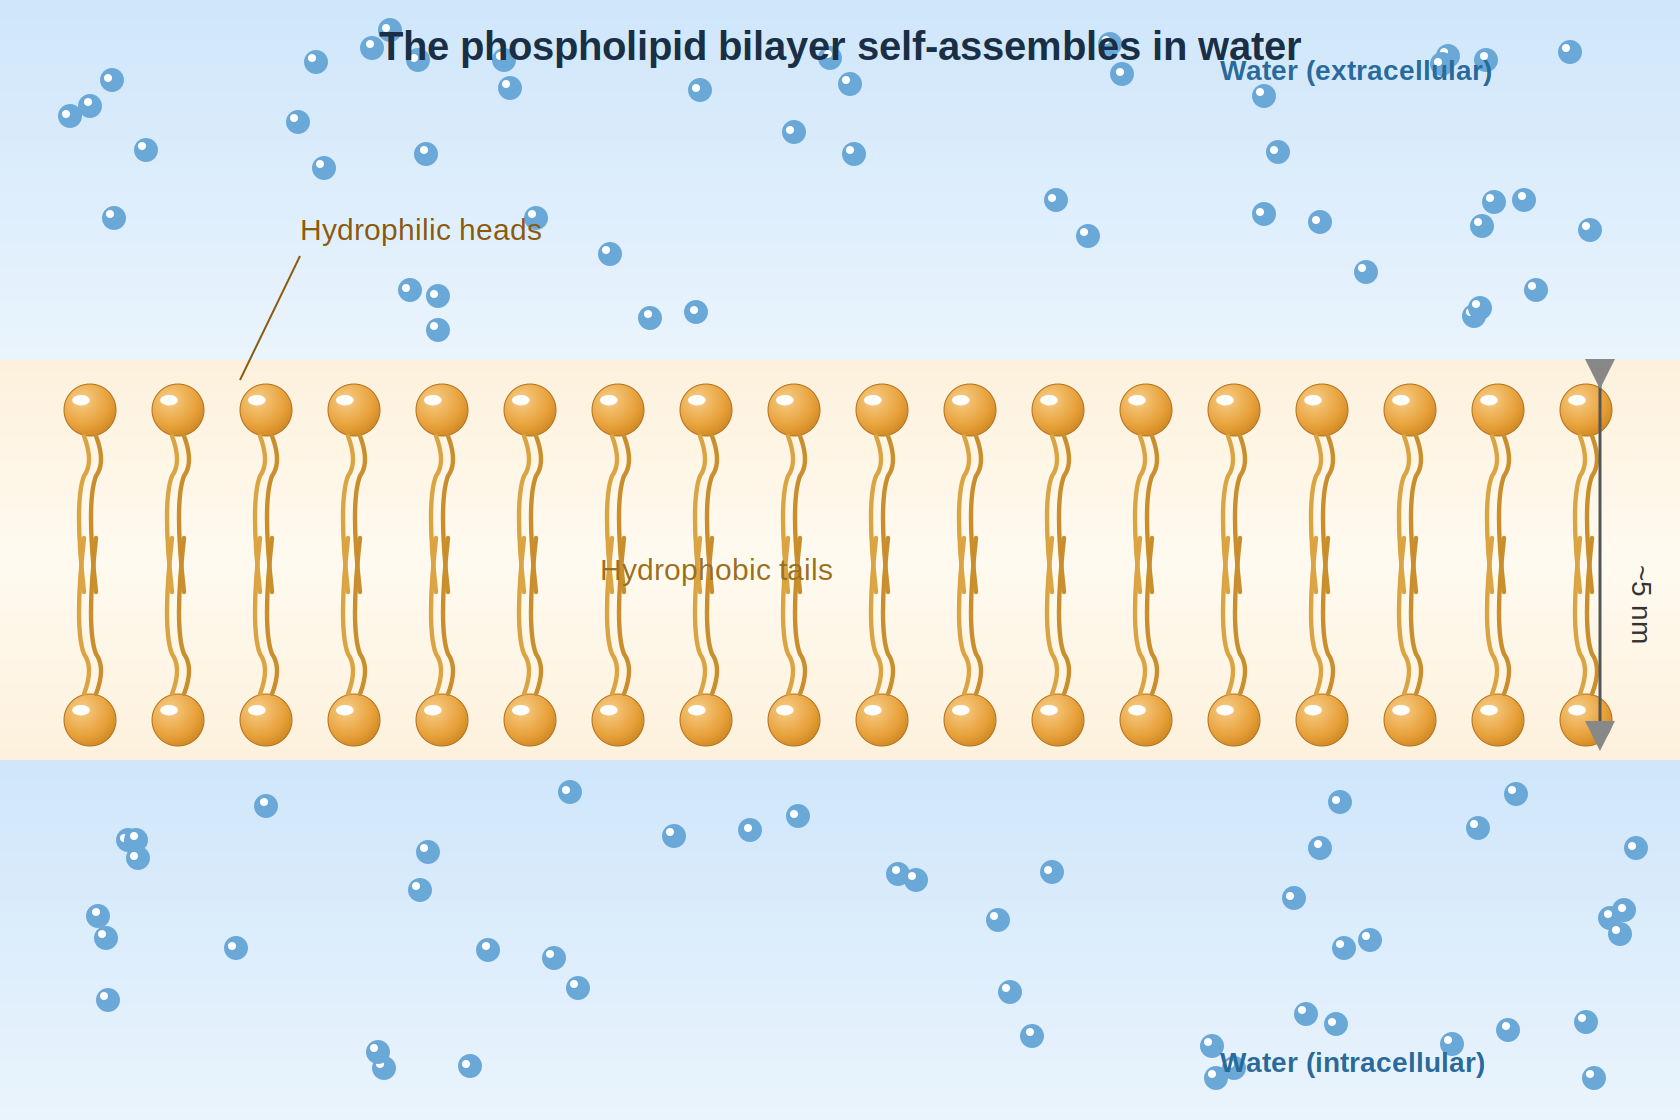
دولایهٔ فسفولیپیدی در آب خودآرایی میکند: سرهای آبدوست رو به آب (درون و بیرونِ سلول) و دمهای آبگریز رو به یکدیگر، و یک هستهٔ چربِ نفوذناپذیر به ضخامتِ حدودِ ۵ نانومتر میسازند.
نتیجهٔ کلیدیِ این ساختار این است که میانهٔ آبگریزِ غشا برای یونها و مولکولهای آبدوست تقریباً نفوذناپذیر است. یک یون که با پوستهای از مولکولهای آب احاطه شده، نمیتواند بهسادگی واردِ این ناحیهٔ چرب شود. همین نفوذناپذیری، پایهٔ جداسازیِ الکتریکیِ درونِ سلول از بیرون است: غشا مانندِ یک عایق میانِ دو محیطِ رسانا (محلولهای یونیِ درون و بیرون) عمل میکند. در فصلِ غشای غیرفعال خواهیم دید که همین ویژگی، غشا را به یک خازن بدل میکند.

دولایهٔ فسفولیپیدی همراه با پروتئینها و دیگر مؤلفههای نشسته در آن.
کانالهای یونی
اگر غشا نسبت به یونها نفوذناپذیر است، پس یونها چگونه از آن میگذرند؟ پاسخ، کانالهای یونی است: گروهی از پروتئینهای تراغشایی که مسیرهایی گزینشی برای عبورِ یون از عرضِ غشا میسازند. چون دولایهٔ لیپیدی بهتنهایی نفوذناپذیر است، این کانالها تنها مسیرِ عبورِ سریعِ یوناند. عبورِ یون از یک کانالِ باز یک فرایندِ غیرفعال است: یونها در جهتِ شیبِ الکتروشیمیاییِ خود حرکت میکنند و هیچ انرژیِ متابولیکی مستقیماً مصرف نمیشود.
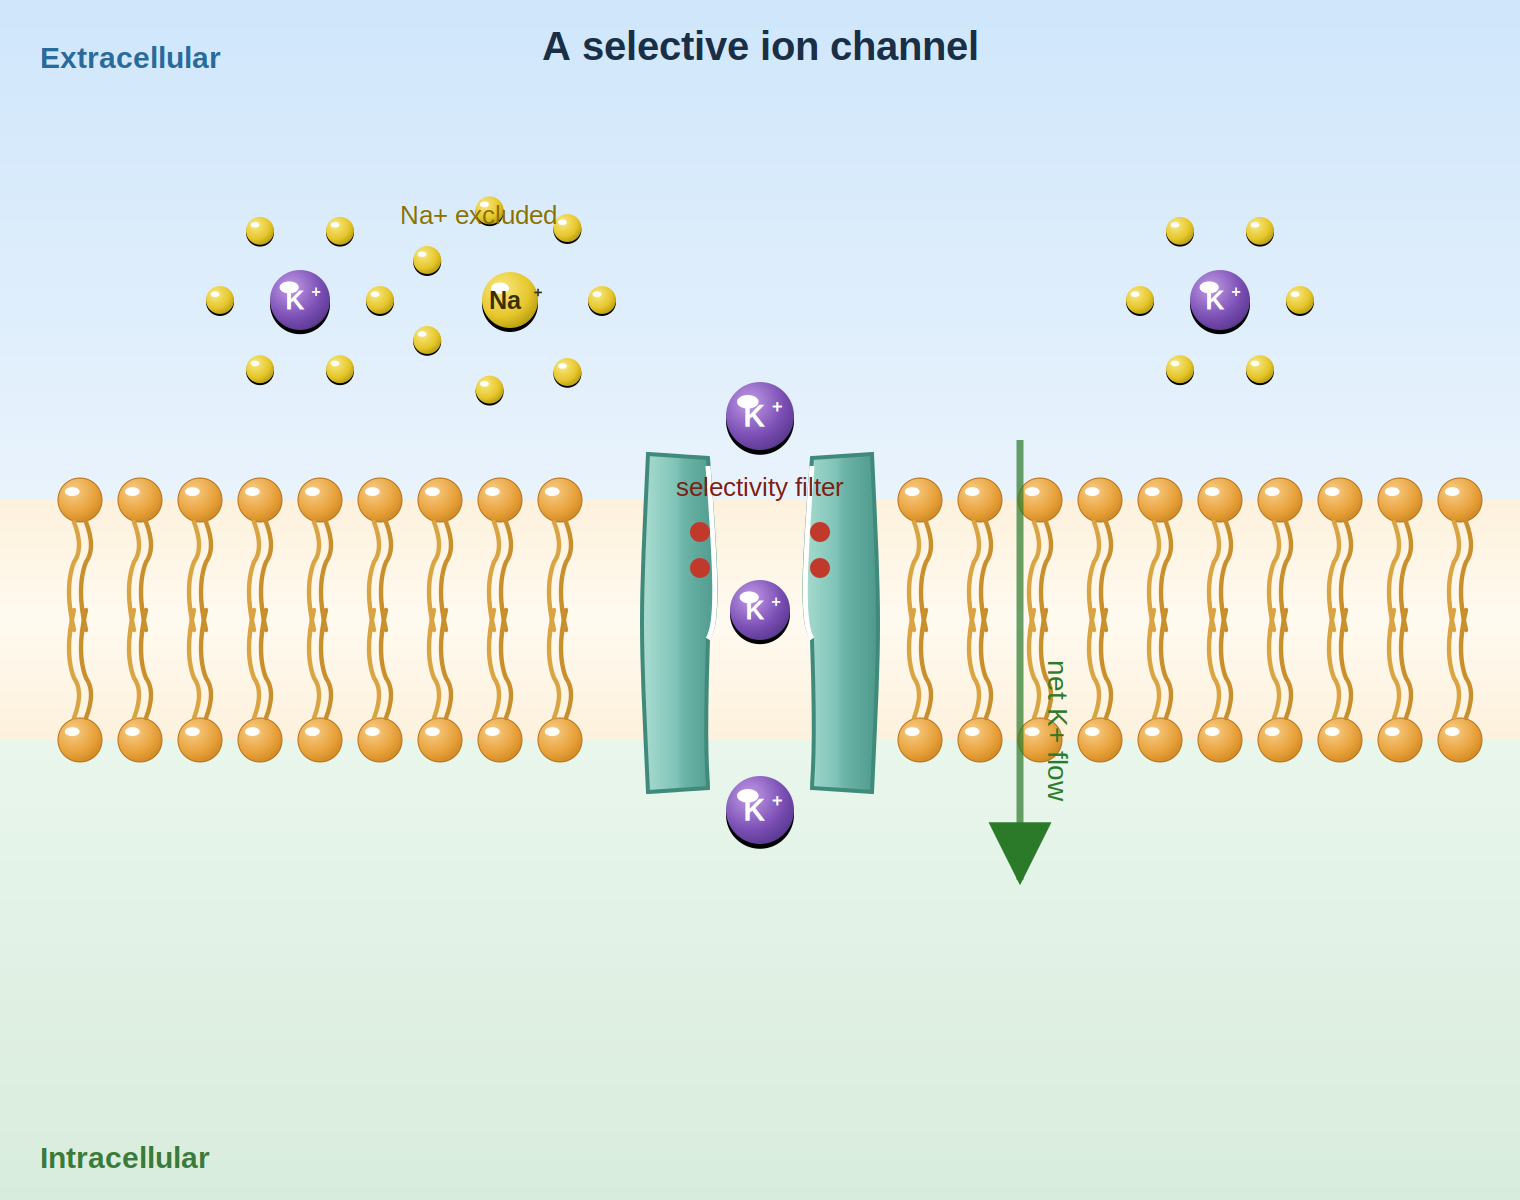
یک کانالِ یونیِ گزینشی که غشا را میشکافد. فیلترِ گزینشگر (اکسیژنهای قرمز) پتاسیم را پس از کندنِ پوستهٔ آبیاش عبور میدهد، اما سدیمِ آبپوشیده را پس میزند؛ فلشِ سبز شارِ خالصِ پتاسیم را نشان میدهد.
دریچهگذاری: باز و بستهشدنِ کانالها
بسیاری از کانالها میتوانند میانِ دو حالتِ باز و بسته جابهجا شوند؛ این فرایند را دریچهگذاری یا گِیتینگ (gating) مینامند. در حالتِ بسته، بخشی از زنجیرهٔ پروتئینی مانندِ دروازهای مسیر را میبندد، و یک محرکِ مشخص با تغییرِ شکلِ (کنفورماسیونِ) پروتئین آن را میگشاید. کانالها را بر پایهٔ نوعِ این محرک دستهبندی میکنند:
- کانالهای وابسته به ولتاژ: با اختلافِ پتانسیلِ دو سوی غشا باز و بسته میشوند. این کانالها در تولید و انتشارِ پتانسیلِ عمل نقشِ کلیدی دارند و در فصلِ پتانسیل عمل و سپس در مدلِ هاجکین–هاکسلی با جزئیات بررسی میشوند.
- کانالهای وابسته به لیگاند: با اتصالِ یک مولکولِ خاص (لیگاند) مانندِ یک ناقلِ عصبی باز میشوند و پایهٔ انتقالِ سیناپسیِ شیمیایی هستند.
- کانالهای مکانیکی: با کشش یا فشارِ مکانیکیِ غشا باز میشوند و در حسِ لامسه، شنوایی و تعادل دخیلاند.
افزون بر این کانالهای دریچهدار، دستهای به نامِ کانالهای نشتی (leak) عملاً همیشه بازند و عبورِ پیوستهٔ مقدارِ کمی یون (بهویژه پتاسیم) را در حالتِ استراحت ممکن میسازند. همانطور که در فصلِ بعد خواهیم دید، همین کانالهای نشتی نقشِ تعیینکنندهای در شکلگیریِ پتانسیلِ استراحت دارند.
این چهار سازوکارِ اصلیِ دریچهگذاری را میتوان در یک نگاه کنار هم دید:
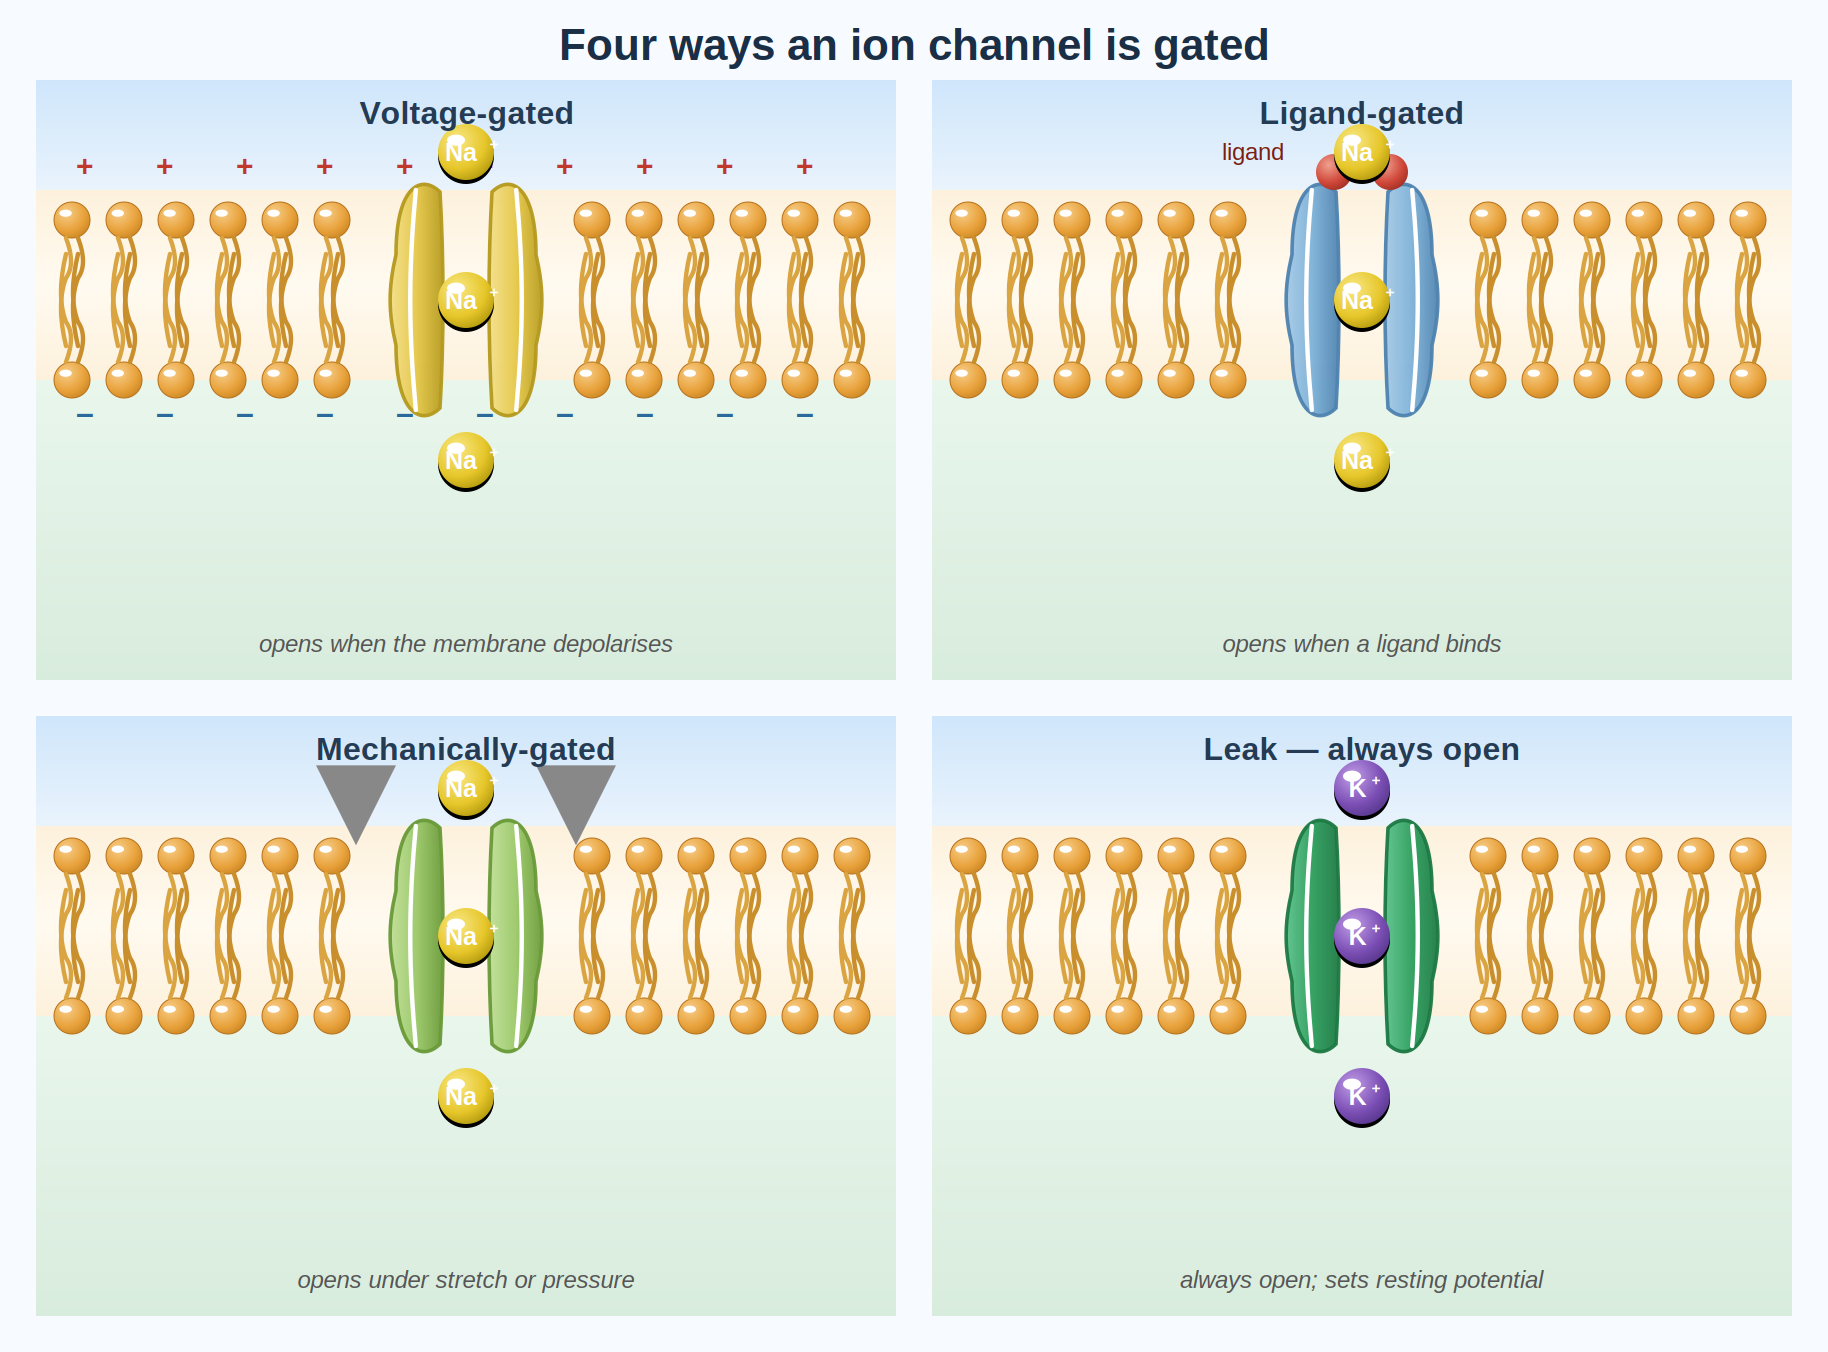
چهار شیوهٔ دریچهگذاریِ کانالِ یونی. وابسته به ولتاژ: حسگرِ باردارِ کانال (بخشِ S4) با تغییرِ ولتاژِ غشا جابهجا میشود و کانال را میگشاید — موتورِ پتانسیلِ عمل. وابسته به لیگاند: چسبیدنِ یک مولکولِ پیامرسان (مثلاً ناقلِ عصبی) به گیرنده، کانال را باز میکند — پایهٔ سیناپس. مکانیکی: کشش یا فشارِ غشا کانال را میگشاید — پایهٔ لامسه و شنوایی. نشتی: همیشه باز است و شارِ پیوستهٔ یون (بهویژه پتاسیم) را برقرار میکند — تنظیمکنندهٔ پتانسیلِ استراحت.
دریچهگذاری تصادفی است
نکتهای که اغلب پنهان میماند این است که باز و بستهشدنِ یک تککانال رویدادی تصادفی است، نه ساعتوار. یک کانالِ منفرد کاتورهای میانِ باز و بسته میجهد، و آنچه ولتاژ (یا لیگاند) تعیین میکند تنها احتمالِ بازبودن است، نه لحظهٔ دقیقِ آن. پس چگونه از این آشوبِ تصادفی، آن منحنیهای صاف و تکرارپذیری بیرون میآید که در فصلهای بعد (مانندِ هاجکین–هاکسلی) به کار میبریم؟

از تککانالِ تصادفی تا رساناییِ صاف. (a) سه تککانال که کاتورهای باز/بسته میشوند. (b) میانگینِ جمعیتی روی \(N\) کانال؛ هرچه \(N\) بزرگتر، این میانگین به منحنیِ قطعیِ \(m(t)\) نزدیکتر میشود. (c) دامنهٔ نسبیِ نوفه مانندِ \(1/\sqrt{N}\) کوچک میشود.
پاسخ در قانونِ اعدادِ بزرگ است: یک تکه از غشا هزاران کانال دارد، و میانگینِ رفتارِ تصادفیِ آنها منحنیِ تقریباً صافی میسازد که نوسانش مانندِ \(1/\sqrt{N}\) کوچک میشود. به همین سبب میتوانیم رساناییِ یونی را با یک تابعِ قطعی و پیوسته توصیف کنیم — کاری که مدلِ هاجکین–هاکسلی میکند. اما در سلولهای کوچک با کانالهای اندک، همین نوفهٔ کانالی میتواند بر زمانبندیِ شلیک اثر بگذارد؛ و این پلی است به مدلهای تصادفیِ نورون.
گزینشگری: چرا پتاسیم و نه سدیم؟
ویژگیِ برجستهٔ بسیاری از کانالها گزینشگریِ بالای آنهاست: یک کانالِ پتاسیمی میتواند یونِ پتاسیم (\(\text{K}^+\)) را با سرعتِ بسیار بالا عبور دهد، اما عبورِ یونِ سدیم (\(\text{Na}^+\)) را تا حدودِ هزار برابر بیشتر سد میکند — با آنکه سدیم کوچکتر است. این رفتار در نگاهِ نخست متناقض مینماید.
توضیح در ساختارِ بخشی از کانال به نامِ فیلترِ گزینشگر نهفته است. هر یون در محلولِ آبی با پوستهای از مولکولهای آب احاطه (هیدراته) شده است، و برای عبور باید این پوسته را از دست بدهد که مستلزمِ صرفِ انرژی است. در فیلترِ کانالِ پتاسیمی، اتمهای اکسیژنِ کربونیلِ زنجیرهٔ پروتئینی چنان آرایش یافتهاند که فاصلهشان دقیقاً با اندازهٔ یونِ پتاسیمِ بدونِ آب جور است؛ پس این اکسیژنها جایِ مولکولهای آب را میگیرند و هزینهٔ آبزداییِ پتاسیم را جبران میکنند. یونِ سدیمِ کوچکتر در همان آرایش نمیتواند بهخوبی با اکسیژنها تماس بگیرد، پس هزینهٔ آبزداییاش جبران نمیشود و عبورش پرهزینه و کند میماند. به این ترتیب گزینشگری نه بر پایهٔ اندازهٔ منفذ، بلکه بر پایهٔ توازنِ دقیقِ انرژی میانِ آبزدایی و برهمکنشِ یون با دیوارهٔ فیلتر استوار است.
از زیستشناسی به مدل
اکنون قطعاتِ اصلی را در دست داریم: یک غشای عایق که درون را از بیرون جدا میکند، و کانالهایی که مسیرهای گزینشیِ عبورِ یوناند. در فصلِ بعد، نخستین پرسشِ کمّی را میپرسیم: اگر غلظتِ یونها در دو سوی غشا متفاوت باشد و غشا تنها نسبت به برخی از آنها نفوذپذیر باشد، چه اختلافِ پتانسیلی پدید میآید؟ پاسخ، پتانسیلِ استراحت است، و ابزارِ آن معادلهٔ نرنست و معادلهٔ گلدمن.
تمرینها
اینها پرسشهای مفهومیاند؛ نخست خودتان پاسخ دهید، سپس کشوییِ «پاسخ» را باز کنید.
تمرینِ ۱
نفوذناپذیری. بهزبانِ خودتان توضیح دهید چرا یک یونِ باردار بهسختی از میانهٔ دولایهٔ لیپیدی میگذرد، حال آنکه یک مولکولِ کوچکِ ناقطبی (مانندِ \(\text{O}_2\)) بهآسانی عبور میکند.
پاسخ
یک یون در آب با پوستهای از مولکولهای قطبیِ آب احاطه شده و بارش را در محیطی با ثابتِ دیالکتریکِ بالا «راحت» نگه میدارد. میانهٔ دولایهٔ لیپیدی یک محیطِ چرب و ناقطبی با دیالکتریکِ بسیار پایین است؛ برای واردشدنِ یون باید پوستهٔ آبی را کنار بگذارد و بارش را در محیطی که بار را «دوست ندارد» ببرد — این هزینهٔ انرژیِ هنگفتی دارد (سدِ انرژیِ بورن). در مقابل، \(\text{O}_2\) ناقطبی است، پوستهٔ آبی ندارد و در چربی حل میشود، پس آزادانه عبور میکند. درسِ کلیدی: غشا برای یونها یک سدِ انرژیِ الکترواستاتیک است، نه صرفاً یک دیوارِ فیزیکی — و برای همین است که یونها به کانال نیاز دارند.
تمرینِ ۲
دریچهگذاری. برای هر یک از سه نوع کانالِ دریچهدار (وابسته به ولتاژ، لیگاند، مکانیکی) یک مثالِ زیستی بیاورید که در آن آن نوع کانال نقشِ اصلی را دارد.
پاسخ
- وابسته به ولتاژ: کانالهای سدیمی و پتاسیمیِ آکسون که پتانسیلِ عمل را میسازند (فصلِ پتانسیل عمل و مدلِ هاجکین–هاکسلی).
- وابسته به لیگاند: گیرندهٔ AMPA/GABA در سیناپس که با چسبیدنِ ناقلِ عصبی باز میشود (فصلِ سیناپسها).
- مکانیکی: کانالهای Piezo در گیرندههای لامسه، و کانالهای سلولهای موییِ گوشِ داخلی که ارتعاشِ صوت را به سیگنالِ الکتریکی بدل میکنند.
تمرینِ ۳
گزینشگری. اگر گزینشگری تنها بر پایهٔ اندازهٔ منفذ بود، انتظار داشتیم کدام یون (سدیم یا پتاسیم) راحتتر عبور کند؟ چرا مشاهدهٔ واقعی برعکسِ این است، و این دربارهٔ سازوکارِ فیلترِ گزینشگر چه میگوید؟
پاسخ
اگر ملاک تنها اندازهٔ منفذ بود، سدیمِ کوچکتر باید راحتتر عبور کند. اما در عمل کانالِ پتاسیمی، پتاسیم را حدودِ هزار برابر بهتر از سدیم عبور میدهد. توضیح این است که گزینشگری بر پایهٔ توازنِ انرژی است، نه اندازه: فیلترِ کانالِ پتاسیمی چنان آرایشی از اکسیژنهای کربونیل دارد که فاصلهشان دقیقاً با یونِ پتاسیمِ آبزدوده جور است و جایِ پوستهٔ آبی را میگیرد، پس هزینهٔ آبزداییِ پتاسیم جبران میشود. سدیمِ کوچکتر نمیتواند همزمان با همهٔ این اکسیژنها تماس بگیرد، پس هزینهٔ آبزداییاش جبراننشده میماند و عبورش پرهزینه است. نتیجه: گزینشگری یک پدیدهٔ انرژیِ شیمیایی است، نه صافیِ مکانیکی.